
Предпосылки и исторический контекст
Путь к открытию пространственной структуры дезоксирибонуклеиновой кислоты (ДНК) занял более восьми десятилетий. В 1869 году швейцарский врач и биохимик Иоганн Фридрих Мишер впервые выделил из ядер лейкоцитов в гнойных повязках богатое азотом и фосфором вещество, названное им «нуклеином», а позднее — нуклеиновой кислотой. Тем не менее до 1940-х годов большинство биологов полагали, что ДНК служит лишь клеточным запасником фосфора или имеет слишком однообразное, повторяющееся химическое строение, чтобы кодировать наследственную информацию; главным кандидатом на роль носителя генов считались сложные белки. При этом в 1934–1936 годах советские биохимики А. Н. Белозерский и А. Р. Кизель опровергли представление о том, что ДНК свойственна лишь животным клеткам, выделив её из растений, а затем показав присутствие нуклеиновых кислот у различных бактерий.
Решающий переворот в понимании биологической роли ДНК произошёл в 1944–1952 годах благодаря двум классическим сериям экспериментов. В 1944 году Освальд Эвери, Колин Маклауд и Маклин Маккарти доказали, что «трансформирующим принципом», превращающим безвредный штамм пневмококков в вирулентный, является очищенная ДНК, а не белок. В 1952 году Алфред Херши и Марта Чейз с помощью радиоактивных изотопов фосфора-32 и серы-35 продемонстрировали, что при заражении бактерий бактериофагами внутрь клетки передаётся именно фаговая ДНК, задающая программу образования нового поколения вирусов. Одновременно в 1949–1951 годах биохимик Эрвин Чаргафф, разделив нуклеотиды методом бумажной хроматографии, установил строгую количественную закономерность (правила Чаргаффа): у разных организмов молярное содержание аденина (A) всегда равно содержанию тимина (T), а гуанина (G) — цитозину (C), хотя соотношение пар A+T к G+C видоспецифично. К началу 1950-х годов стало ясно, что именно ДНК несёт генетический код, однако оставалось неизвестным, сколько полинуклеотидных цепей образуют молекулу и каким образом она способна к точному самовоспроизведению.
Ход событий и ключевые механизмы
Экспериментальные прорывы в Лондоне и модельное конструирование в Кембридже
К 1951–1953 годам разгадка трёхмерной архитектуры ДНК превратилась в интеллектуальную гонку между тремя научными группами: Калифорнийским технологическим институтом (где Лайнус Полинг, открывший альфа-спираль белков, в начале 1953 года предложил ошибочную трёхцепочечную модель ДНК с фосфатами внутри), группой Королевского колледжа Лондона и молодыми исследователями Кавендишской лаборатории в Кембридже.
- Рентгеноструктурный анализ в Королевском колледже Лондона: физик Морис Уилкинс совместно с физикохимиком Розалинд Франклин и аспирантом Реймондом Гослингом получили чёткие рентгенограммы волокон ДНК. Франклин разграничила дегидратированную A-форму и высокогидратированную B-форму ДНК (характерную для живой клетки) и в 1952 году получила знаменитую рентгенограмму B-формы («Фотография 51»), Х-образный дифракционный крест которой явно указывал на спиральную геометрию с диаметром около 2 нм и шагом витка 34 ангстрема (3,4 нм) при расстоянии между соседними нуклеотидами 3,4 ангстрема.
- Синтез данных в Кавендишской лаборатории: американский генетик Джеймс Уотсон и британский физик Фрэнсис Крик отказались от чисто математических функций Паттерсона в пользу построения масштабных стереохимических моделей. Получив доступ к отчёту и рентгеновским данным группы Королевского колледжа (в том числе через Уилкинса и отчёт Макса Перуца), а также учтя правила Чаргаффа и правильные кето-формы таутомеров азотистых оснований (на что указал кристаллограф Джерри Донохью), Уотсон и Крик в феврале — марте 1953 года собрали непротиворечивую пространственную модель.
- Апрельский триумвират публикаций в Nature: 25 апреля 1953 года в одном номере журнала Nature вышли три взаимодополняющие статьи — краткая теоретическая заметка Уотсона и Крика («Молекулярная структура нуклеиновых кислот»), статья Уилкинса, А. Стоукса и Г. Уилсона и работа Франклин и Гослинга с рентгеновским подтверждением спиральной структуры.
Ключевые структурные принципы модели Уотсона — Крика
Предложенная модель с поразительной элегантностью объединяла физико-химические ограничения и биологическую функцию наследственности:
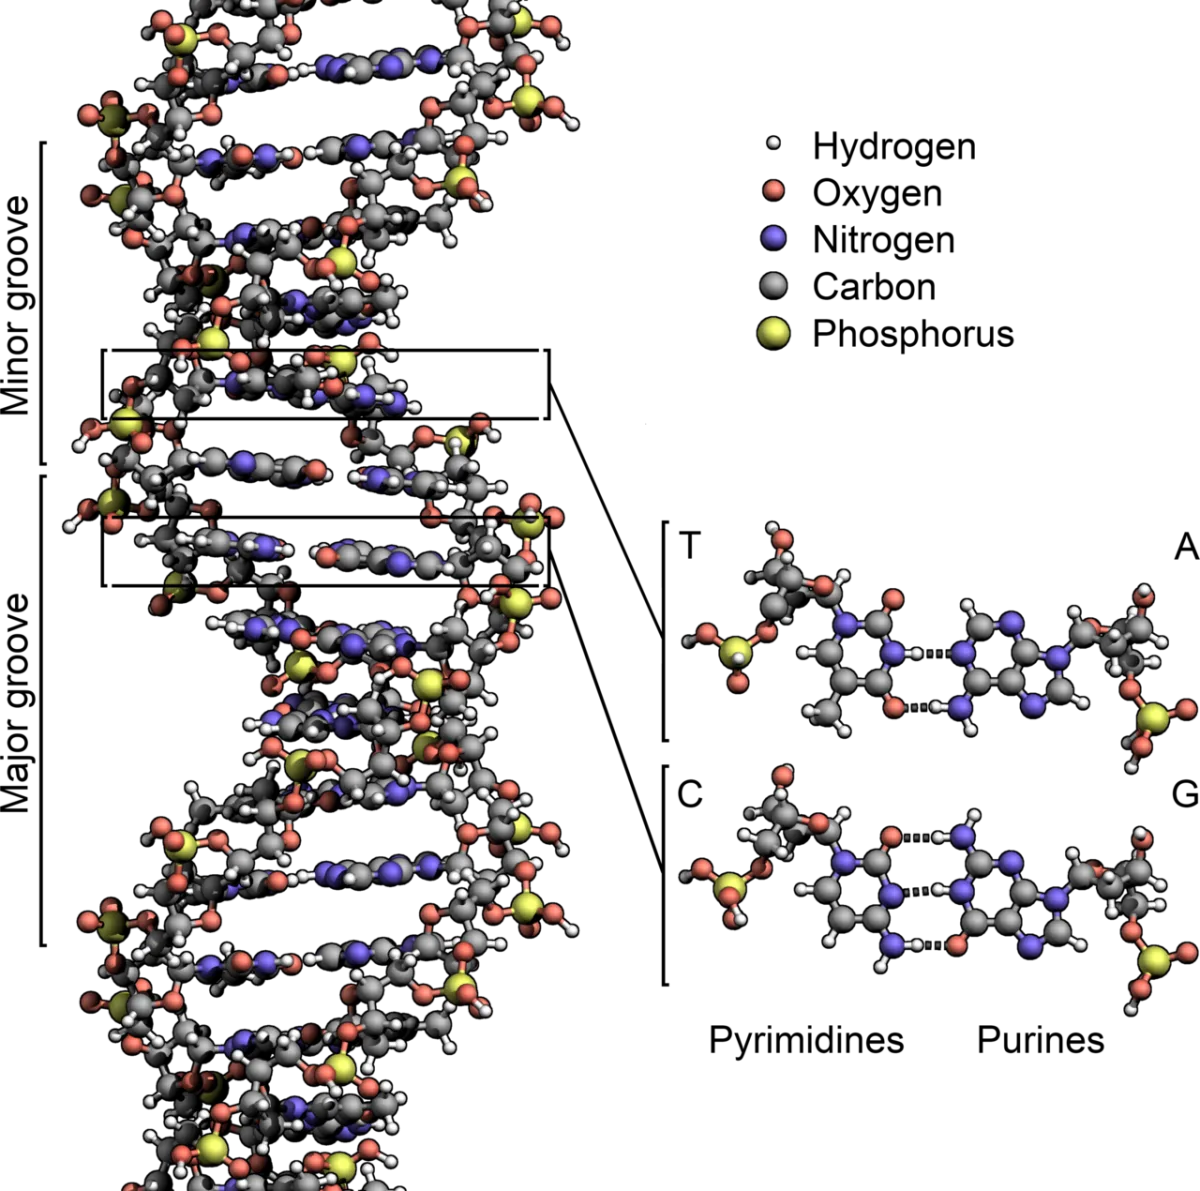
- Двойной антипараллельный винт: молекула состоит из двух длинных полинуклеотидных цепей, закрученных в правозакрученную двойную спираль (B-форма) вокруг общей оси. Сахарофосфатные остовы (чередование остатков 2-дезоксирибозы и фосфатных групп, соединённых 3'→5'-фосфодиэфирными связями) обращены наружу, к водной среде, тогда как цепи идут в противоположных направлениях (антипараллельны: от 5'-конца к 3'-концу и наоборот). Наличие большой (22 Å) и малой (12 Å) бороздок объясняло последующее связывание регуляторных белков.
- Комплементарное спаривание оснований: внутрь спирали обращены плоские кольца азотистых оснований, причём крупный двукольцевой пурин одной цепи всегда соединяется водородными связями с меньшим однокольцевым пиримидином другой цепи — аденин (A) образует пару с тимином (T) двумя водородными связями, а гуанин (G) с цитозином (C) тремя связями. Это обеспечивало постоянный диаметр спирали (~20–24 Å) и сразу объясняло правила Чаргаффа.
- Механизм копирования информации: поскольку последовательность оснований одной цепи однозначно задаёт последовательность другой, разрыв водородных связей позволяет каждой цепи служить матрицей для синтеза новой комплементарной нити. В знаменитой заключительной фразе статьи 1953 года Уотсон и Крик отметили, что предложенное спаривание «непосредственно указывает на возможный механизм копирования генетического материала».
Источниковедческая база и свидетельства
Источниковедческую основу изучения открытия 1953 года составляют прежде всего три оригинальные статьи в журнале Nature от 25 апреля 1953 года (т. 171, с. 737–741): публикация Дж. Уотсона и Ф. Крика, а также сопровождавшие её экспериментальные статьи группы М. Уилкинса и Р. Франклин с Р. Гослингом, дополненные майской статьёй Уотсона и Крика о генетических следствиях структуры ДНК. К первичным документам относятся и лабораторные журналы Розалинд Франклин 1951–1953 годов, отчёт Медицинского исследовательского совета (MRC), переданный Максом Перуцем Крику и Уотсону, переписка участников (включая письма Крика сыну и коллегам, а также переписку Уотсона и Полинга) и материалы Нобелевского комитета 1962 года.
Ценнейшим, хотя и глубоко субъективным мемуарным источником стала книга Джеймса Уотсона «Двойная спираль» (1968; русский перевод — 1969), вызвавшая острую полемику среди современников (Крика, Уилкинса, Чаргаффа) из-за откровенного описания научной конкуренции и предвзятого портрета Розалинд Франклин. Историкам науки эти источники приходится сопоставлять с биографическими материалами, устными интервью участников кембриджской и лондонской групп, а также с более ранними публикациями Эвери (1944), Чаргаффа (1950) и Херши — Чейз (1952), отразившими смену парадигмы от «белковой» теории гена к нуклеиновой.
Исторические итоги и долгосрочное значение
Открытие структуры ДНК в 1953 году считается поворотным пунктом биологии XX века, сравнимым по масштабу с теорией эволюции Дарвина. Уже в 1958 году эксперимент Мезельсона — Сталя подтвердил вытекавший из модели полуконсервативный механизм репликации, при котором каждая дочерняя двойная спираль сохраняет одну исходную и одну вновь синтезированную цепь. Далее были сформулированы «центральная догма» молекулярной биологии (ДНК → РНК → белок), процессы транскрипции (синтеза матричной, транспортной и рибосомальной РНК с заменой тимина на урацил) и трансляции, а к середине 1960-х годов был полностью расшифрован триплетный генетический код (64 кодона для 20 аминокислот и стоп-сигналов).
В 1962 году Фрэнсис Крик, Джеймс Уотсон и Морис Уилкинс были удостоены Нобелевской премии по физиологии или медицине. Долгосрочные последствия 1953 года вышли далеко за пределы академической генетики:
- Развитие структурной биологии: помимо канонической B-формы ДНК были описаны дегидратированная A-форма, левозакрученная Z-форма, трёхцепочечные (включая H-ДНК) и четырёхцепочечные (G-квадруплексы на теломерах) структуры, а также роль эпигенетических модификаций (метилирования цитозина) и механизмов репарации.
- Революция в медицине и биотехнологиях: открытие рестриктаз, лигаз и полимераз породило генную инженерию, ПЦР-диагностику, ДНК-профилирование в криминалистике, таргетную терапию наследственных и онкологических заболеваний, а затем проект «Геном человека» и редактирование генома.
- Эволюционная антропология и нанотехнологии: анализ древней ДНК (сохраняющейся в уникальных условиях свыше 1–2 млн лет) преобразил палеогенетику, а программируемое комплементарное связывание легло в основу ДНК-нанотехнологий и биологических систем хранения данных.
Дискуссии и оценки в историографии
В истории науки события 1953 года стали предметом глубоких историографических и этических дискуссий, центральное место среди которых занимает вопрос о вкладе и научном признании Розалинд Франклин (скончавшейся от рака в 1958 году в возрасте 37 лет и потому не вошедшей в число нобелевских лауреатов 1962 года, поскольку премия не присуждается посмертно). После выхода мемуаров Уотсона «Двойная спираль» и исследований историков науки (Р. Олби, Э. Сейр, Б. Мэддокс) сложились различные оценки: феминистская и критическая историография указывала на несанкционированное использование Уотсоном и Криком «Фотографии 51» и отчёта MRC без прямого ведома Франклин и на недооценку её роли в первые десятилетия после открытия.
Вместе с тем ряд историков науки (в частности, Р. Олби, М. Франк-Каменецкий и современные исследователи архивов Кингс-колледжа) подчёркивают необходимость избегать упрощений: Франклин к началу 1953 года независимо приблизилась к параметрам B-ДНК, доказав внешнее положение фосфатного остова и спиральность, однако не сразу сформулировала идею антипараллельных комплементарных пар оснований, тогда как Уотсон и Крик синтезировали в единую модель данные рентгенографии, химическую стехиометрию Чаргаффа и таутомерную химию оснований. Таким образом, современная историография рассматривает открытие 1953 года не как единоличный триумф двух учёных, а как коллективный междисциплинарный прорыв биохимиков, физиков-кристаллографов и генетиков двух британских лабораторий.